blog

ACE2-IgG4 Fc融合タンパク質を釣り餌として鼻腔に発現させるAAVベクターを用いたSARS-CoV-2の感染阻害遺伝子治療

University of Pennsylvania, Philadelphia, USAのグループは、COVID-19を感染阻害する為に、AAVベクターに乗せたACE2-IgG4 Fc融合タンパク質を釣り餌として鼻腔内にスプレーするという遺伝子治療を提案しています。
https://journals.plos.org/plospathogens/article?id=10.1371/journal.ppat.1009544

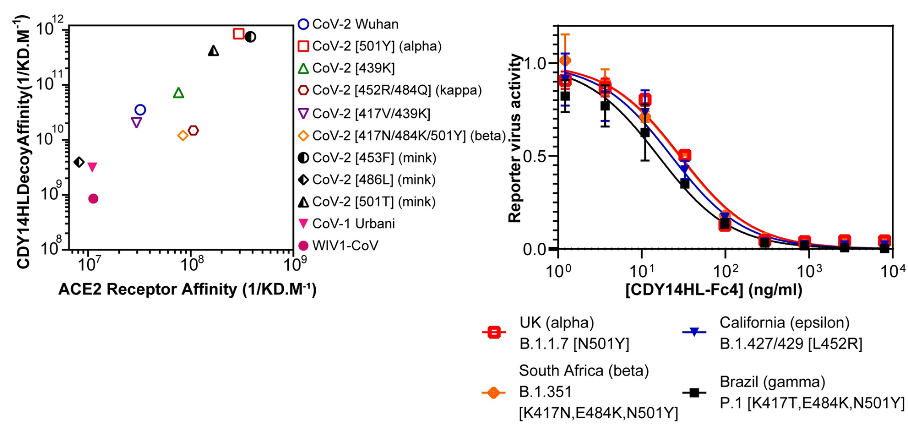
SARS-CoV-2の幅広い変異に対して1,000倍アフィニティーを改善したACE2タンパク質を開発し、それをIgG4 Fcと融合することでSARS-CoV-2に対する釣り餌タンパク質としました。最も優れたSARS-CoV-2に対する釣り餌となる融合タンパク質を CDY14-Fc と名付けました。このアフィニティー・マチュレーションは、酵母ディスプレイによる (>108にも上る) ACE2 変異体フォーマットを用いて実現されました。

CDY14-Fc がSARS-CoV-2の各種変異株(B.1.1.7/アルファー変異株、417N/484K/501Y from B1.351/ベータ変異株、452R/484Q from B.1.617.1/カッパー変異株などなど)を中和できることが下図のように示されており、抗体とは異なり、釣り餌タンパク質の方がより広い中和活性を示し、変異株に対する有効性を持っているようです。

この方法のゴールは、釣り餌タンパク質をコーディングしたAAVベクターをスプレーで鼻腔内に噴霧し、鼻腔内で釣り餌タンパク質を発現させることです。このアイデアの有効性は、類人猿を用いたin vivo実験にて検証されました。

SARS-CoV-2のoligo-mannoseとS2のHR1ドメインを両睨みする二価タンパク質でSARS-CoV-2の感染を抑える

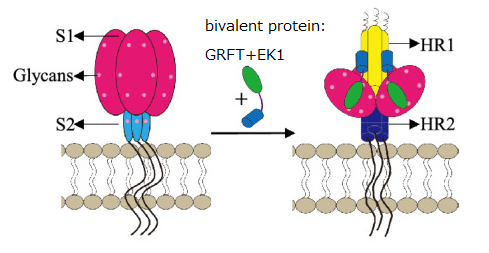
Hanghai Institute of Infectious Disease and Biosecurity, Fudan University, Shanghai, Chinaらのグループは、SARS-CoV-2の感染を抑える為に、SARS-CoV-2 Spikeタンパク質のoligo mannoseとS2サブユニットにあるHR1ドメインを両睨みする二価タンパク質を開発しました。
https://www.ncbi.nlm.nih.gov/pmc/articles/PMC8264481/

宿主細胞に感染する為に、 SARS-CoV-2 はSpikeタンパク質のS1サブユニットに存在するRBDを介して宿主細胞表面のACE2と結合します。その後、プロテアーゼによる切断を受けて、SpikeのS2サブユニットの構造変化が起こり、HR1 と HR2ドメインの間にsix-helix bundle(6-HB)が形成され、膜融合に向けてウイルスと宿主細胞を橋渡しします。それ故、SARS-CoV-2の膜融合と侵入を阻害する為には、S1、S2両方のサブユニットが重要なターゲットとなり得ます。S2サブユニットの構造は、S1サブユニットよりも保存されている為、コロナウイルスの感染阻害に対しては、より適応性が高いと考えられます。

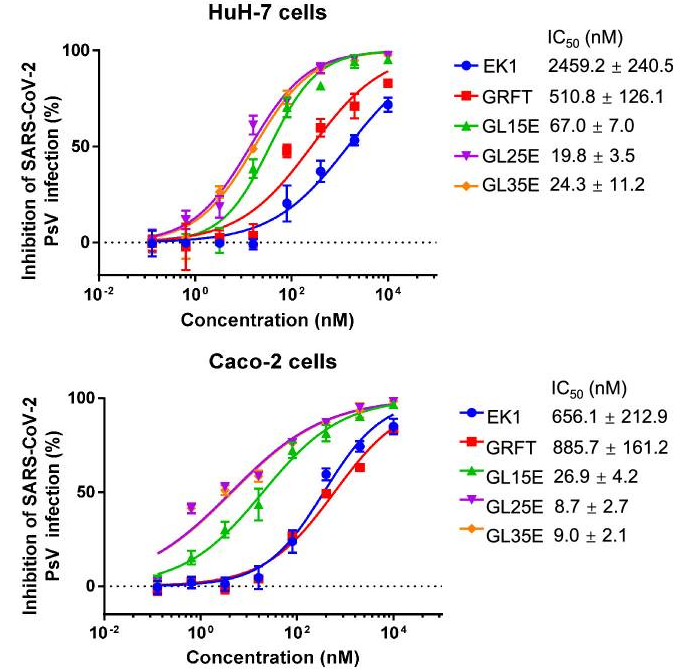
著者らは、抗ウイルス活性を示すレクチンであるGRFT(oligo mannoseに結合特異性を有する)と、HR1ドメインに対する阻害ペプチドであるEK1を含む二価タンパク質を作り上げ、SARS-CoV-2の変異株やその他コロナウイルスへの阻害効果を評価しています。3種の二価タンパク質(GRFT と EK1を含む)プラスミドを作り上げ、リコンビナントタンパク質を得ました。3種のそれは、GRFTとEK1の間のリンカー構造がその長さという点で異なっており、具体的には次のような3種のリンカー、L15 (GGGGS)3、L25 (GGGGS)5、(GGGGS)7 を使っています。出来上がった3種のリコンビナントは、次のように命名されました、GRFT-L15-EK1 (GL15E)、GRFT-L25-EK1 (GL25E)、GRFT-L35-EK1 (GL35E)。

評価の結果、GL25E 最も優れた阻害効果を持つことが示されました(下図参照)。

NiclosamideのSARS-CoV-2感染阻害:SARS-CoV-2のエンドサイトーシスを利用した感染経路の阻害

National Centre for Biological Sciences (TIFR), Bengaluru, Indiaらのグループは、SARS-CoV-2 感染におけるエンドサイトーシスを利用した感染経路の重要性について述べています。
https://journals.plos.org/plospathogens/article?id=10.1371/journal.ppat.1009706

ウイルス感染におけるキーとなるステップは、ウイルス遺伝子の宿主細胞の細胞質内への放出にあります。これを行うために、ウイルスは細胞膜上の特定の受容体に結合し、引き続いて直接的に細胞膜と融合、あるいはまたエンドサイトーシスによる取り込みに引き続いて細胞膜融合を行います。この両方の細胞感染ルートは、SARS-CoV-2 の感染において起きているようであり、宿主細胞膜上の受容体やプロテアーゼの可用性に依存しています。Angiotensin converting enzyme 2 (ACE2) がSARS-CoV-2の良く知られた受容体でありますが、他の受容体(C-型レクチンなど)や共受容体(ヘパラン硫酸など)が数多くのグループから報告されています。 加えて、SARS-CoV-2 は、侵入を果たすには、宿主細胞のプロテアーゼによるウイルスのSpikeタンパク質の切断を必要とします。それ故、ウイルスは、もしもSpikeタンパク質が細胞膜上のTMPRSS2のようなセリンプロテアーゼによって切断される場合には、細胞膜上で直接的に融合し、そうでない場合には、エンドーライソソーム経路を細胞膜融合に使用し、そこではSpikeタンパク質は、システインプロテアーゼである cathepsinによってSpikeタンパク質がプライム状態になります。このようにして、宿主細胞におけるウイルスの侵入と感染は、これらのキーとなる要素、すなわち受容体(ACE2など)やプロテアーゼ(furin, TMPRSS2, cathepsin)の存在によって大きく影響されます。

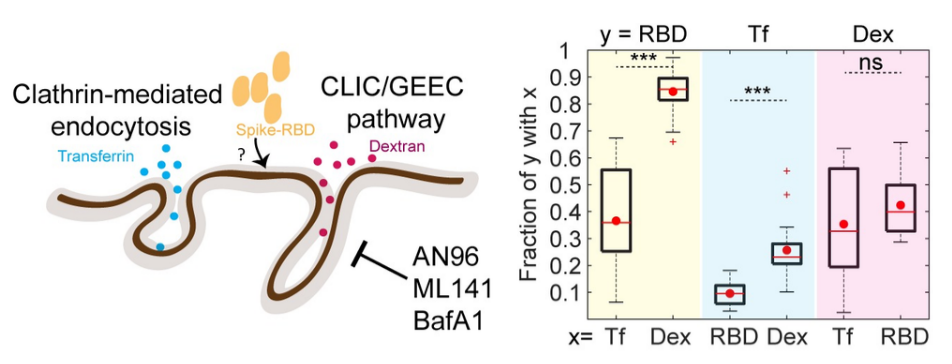
CLIC/GEEC (CG) 経路は、clathrin-非依存のエンドサイトーシス経路(CLICs)である細管小胞輸送(tubulovesicular primary carriers)によって媒介されます。細管小胞は細胞膜から直接的に発生し、その後グリコシルホスファチジルイノシトール(GPIアンカー)濃縮小胞(GEECs)と呼ばれる細管小胞へと成熟していきます。

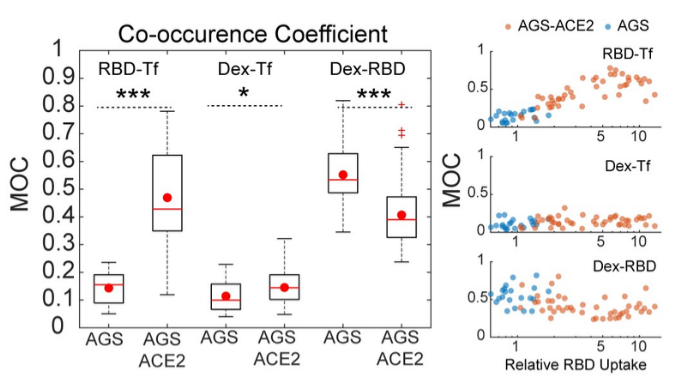
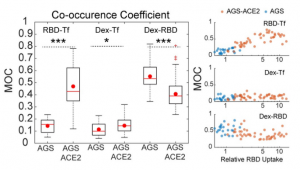
著者らは、ACE2の発現をコントロールした胃上皮細胞(AGS)を用いて、SARS-CoV-2 Spikeタンパク質のRBDのエンドサイトーシスを研究しています。AGSは、通常ではACE2を発現していない細胞株として認識されています。 このAGSにおいては、RBDは、clathrin-mediated endocytosis (CME) 経路ではなく、CG 経路によって取り込まれており、AGS細胞における薬理的な擾乱に敏感であることがわかりました。
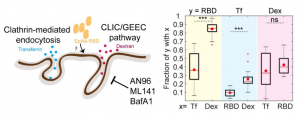
AGS細胞におけるACE2の効果を調べるために、ACE2を異所的に発現させた安定株(AGS-ACE2)を作りました(ACE2 の発現は、qPCRとウエスタンブロットによって確認されました)。このように改変したAGS-ACE2 細胞においては、RBDの取り込みは、AGS細胞に比べて3倍ほど増加していました。AGS-ACE2細胞におけるRBDの取り込み経路を確認する中において、RBDとトランスフェリンの増加が同時に起こっており、AGS細胞と比較してRBDとdextranの同時取り込みが減少していることがわかりました。 このことは、CG経路に加えて、AGS-ACE2細胞においては、CME経路を介したRBDの取り込みが支配的になっていることを示唆します。
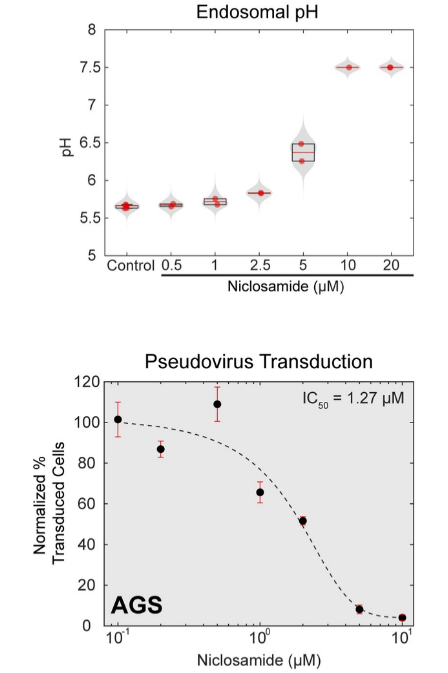
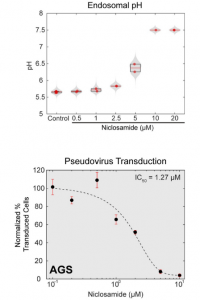
最後に、niclosamide がエンドソーム内pHを中性化し、SARS-CoV-2の感染を抑えることができることが下図のように示されました。治療薬としての可能性を示すものです。
SARS-CoV-2の変異株(B.1.617.1 = カッパー株、B.1.617.2 =デルタ株)に対するファイザーとアストラゼネカのワクチンの効果について

University of Oxford, Oxford, UKらのグループは、SARS-CoV-2の変異株(B.1.617.1 = カッパー株、B.1.617.2 =デルタ株)に対するファイザーとアストラゼネカのワクチンの効果について述べています。
https://www.ncbi.nlm.nih.gov/pmc/articles/PMC8218332/

カッパー株 = B.1.617.1 は、RBDにおける二つの変異(L452R と E484Q)によって特徴付けられ、デルタ株 = B.1.617.2 は、RBDにおけつ二つの変異(L452R と T478K)によって特徴付けられます。L452Rという変異は、これら二つに共通です。

著者らは、BNT162b2 Pfizer-BioNTech あるいは ChAdOx1 nCoV-19 Oxford-AstraZenecaのワクチンを接種したヒトの血清の B.1.617.1 や B.1.617.2 に対する中和活性を評価しました。

B.1.617.1 に対する幾何平均の中和活性は、Pfizer-BioNTechの場合で、Victoria株と比較して 2.7-倍減少し(p < 0.0001)、Oxford-AstraZenecaの場合は、2.6-倍減少しました(p < 0.0001)。Victoria株とは、武漢ウイルス系統であり、オーストラリアでアイソレートした株です。

B.1.617.2 に対する幾何平均の中和活性は、Pfizer-BioNTechの場合で、Victoria株と比較して 2.5-倍減少し(p < 0.0001)、Oxford-AstraZenecaの場合は、4.3-倍減少しました(p < 0.0001)。

Oxford-AstraZeneca や Pfizer-BioNTechのワクチンで得られる中和活性はこのように減少していますが、これらの変異株がワクチンで得られる中和活性を完全に亡き者にしてしまうというエビデンスはありませんので、その点には注意しましょう。

COVID-19を発症するとスフィンゴシンが減少する

Medical University of South Carolina, Charleston, USAらのグループは、血中のスフィンゴシンの減少が、COVID-19の無症状患者とそうでないヒトを早期に見分けるための高感度で特異的なマーカーになり得ると報告しています。
https://www.nature.com/articles/s41598-021-93857-7

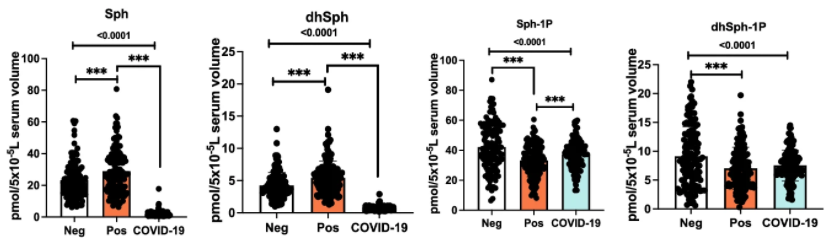
抗体が陽性 (n = 134) と陰性 (n = 130)の比較において、スフィンゴシンのレベルが陽性者で少しですが有意に(p < 0.05)上昇していました(陽性者=28.96 vs. 陰性者=23.25 pmol/5 × 10−5 L serum)。 そして更に、COVID-19 患者においては、血中のスフィンゴシンのレベルが無症状者に比較して、15倍ほど減少していました(無症状者=28.96、COVID-19患者=1.88 pmol/5 × 10−5 L serum)。下図においては、Sphingosine (Sph)、dihydro-sphingosine (dhSph)、sphingosine 1-phosphate (Sph-1p)と略されている。

ROC解析の結果は、スフィンゴシンの閾値を 8.2 pmol/5 × 10−5 L と設定した場合に、感度 = 98.47%(95% CI 94.60–99.73%)、特異度 = 98.51%(95% CI 94.72–99.73%)が得られ、SARS-CoV-2抗体は陽性ではあるものの無症状な人とCOVID-19患者を見分けるに高感度で特異度の高いマーカーであることが分かりました。 しかしながら、スフィンゴシンとdihydro-スフィンゴシンは、重症度の見分けはできませんでした。

生化学的なバイオマーカーである lactate dehydrogenase(LDH)のレベルが、COVID-19患者の重症者で上昇しているという事が知られています。ここで発見されたスフィンゴシンのレベルの減少は重症度と相関していませんが、これらを合わせると、スフィンゴシンのレベルが高いとCOVID-19の症状を抑えることが出来、スフィンゴシンのレベルが減少すると炎症が助長される場合があると言えそうです。

SARS-CoV-2の感染によってヒト気管支上皮細胞のACE2の発現が上昇し感染を加速する

Second Military Medical University, Shanghai, Chinaらのグループは、ヒトの気管支上皮細胞で、SARS-CoV-2感染がACE2の発現をエンハンスすることを報告しています。
https://www.ncbi.nlm.nih.gov/pmc/articles/PMC8254647/

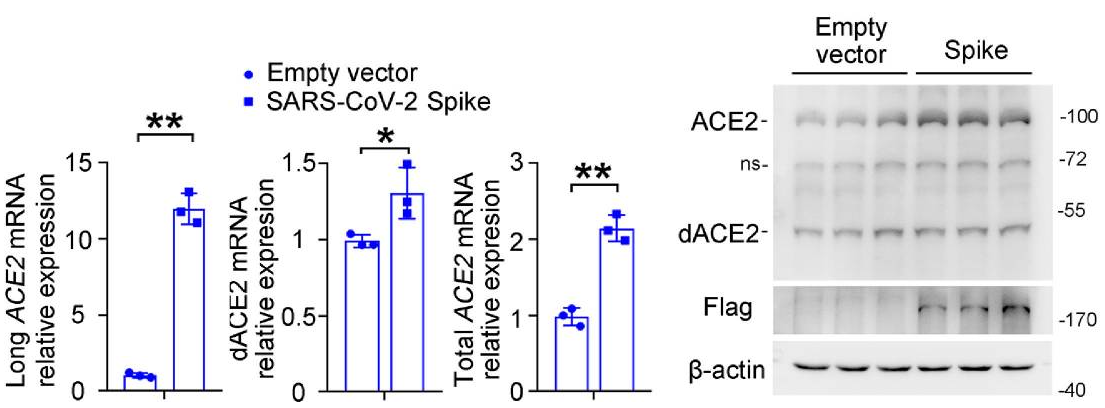
SARS-CoV-2の感染受容体であるACE2が、ヒトの気管支上皮細胞(BASE-2B細胞)にSARS-CoV-2 Spikeタンパク質をトランスフェクトすることで、大きく発現上昇することが見つかりました。下図において、BASE-2B細胞は、空のベクター或いはSARS-CoV-2 Spikeを発現するようにしたベクターでトランスフェクトされており、long ACE2、dACE2、total ACE2をqRT-PCRで検出したところ、SARS-CoV-2 Spike有で大きく発現上昇しているのがわかります。また、long ACE2 と dACE2 を、C-terminal anti-ACE2 抗体でWestern blotしたものも示されており、同様にSARS-CoV-2 Spike有で発現が上昇していることがわかります(β-actin は、コントロールとして使われています)。

SARS-CoV-2 Spikeタンパク質は、IFN-stimulated genes (ISGs)の発現を促しますので、Spikeタンパク質がJAK-STATシグナリングを活性化させることによってACE2の発現を誘導できるのかどうか?を確認しています。そこで、Spikeを過剰に発現するようにしたBASE-2B細胞を用いて、リン酸化と、STAT1 と STAT2 活性化を評価したところ、確かにSARS-CoV-2 Spikeの影響で、STAT1とSTAT2のリン酸化が加速され、これらが活性化されていることが分かりました。更に、STAT1の活性化を阻害するFludarabine を加えたところ、BEAS-2B細胞におけるSARS-CoV-2 Spikeによって誘起されたACE2の発現が有意に低下しました。これらのことを総合すると、SARS-CoV-2 SpikeがIFNエフェクターであるJAK-STATシグナリングを活性化することによってlong ACE2の発現を誘起しているということが明らかであります。

SARS-CoV-2 S2のエピトープがコロナウイルスに対する交差中和抗体を誘発できる免疫原の青写真となりうる

Fred Hutchinson Cancer Research Center, Seattle, USAらのグループは、SARS-CoV-2 S2 に存在するエピトープが、コロナウイルスに対する交差中和抗体を誘発できる免疫原になり得ると報告しています。
https://pubmed.ncbi.nlm.nih.gov/34237283/

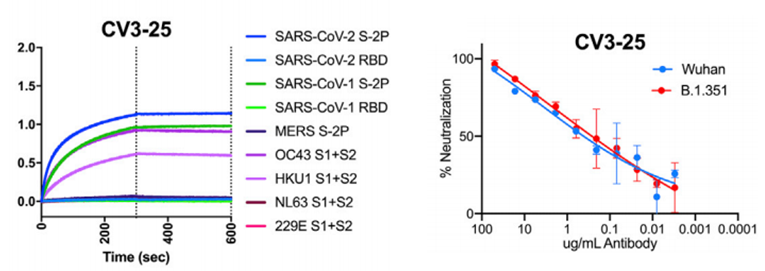
4名のCOVID-19回復期患者から得た198種類の抗体から、14種の中和抗体を精製しました。その内、1つはNTDをターゲット、1つはS2のエピトープを認識し、11種はRBDに結合しました。それらの IC50は、 0.007 μg/ml から 15.1 μg/mlに分布していました。

S2 サブユニットには、少なくとも1つのエピトープが、免疫原性は弱いものの、5つのヒトコロナウイルスの4つに存在しています(SARS-CoV-1、SARS-CoV-2、OC43、HKU1)。そのようなエピトープは、有望な交差抗体として見つかったCV3-25に認識されており、コロナウイルスに対する広範囲な中和抗体を開発する場合の貴重な免疫原になり得ると結論されました。因みに、CV3-25のSARS-CoV-2に対するIC50は、0.34 μg/mlでありました。

COVID-19回復期患者から得た抗体のSARS-CoV-2変異株に対する抵抗性の評価

熊本大学らのグループは、COVID-19回復期患者由来でSARS-CoV-2 RBDに強いアフィニティーを持つIgGは、B.1.351やP.1変異株に対しても効果的な中和活性を有すると述べています。
https://pubmed.ncbi.nlm.nih.gov/34237284/

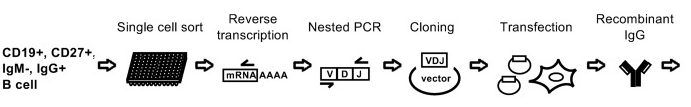
1102種類のIgGを、2020年3月にSARS-CoV-2に感染したCOVID-19回復期患者=2名からRecombinant IgGとして得ることが出来ました。この内88種がSARS-CoV-2 Spikeに結合し、その内の10%がRBDに結合しました。最終的に中和活性が確認されたIgGは、5種類となりました。

得られた5種類のIgGですが、ひとつはNTDをターゲットとしており(= 6-74)、四つのIgGは、RBDをターゲットとしていました(= 3-5、8-92、9-105、10-121)。

これらmAbの中和活性を、WT(614G変異を含む)およびB.1.1.7、B.1.351、P.1、and mink cluster 5という変異株に対して測定しています。ほとんどのmAbは、B.1.1.7、mink cluster 5変異株に対して同程度の強さで中和活性を示しました。B.1.1.7は、6-74 (3.3-倍) と 3-5 (6.0-倍)に対しては抵抗性を示しました。NTDをターゲットとする 6-74は、mink cluster 5に対しては効果的ではありません。中和活性は、B.1.351やP.1に対しては低下しており、P.1 は、6-74 や 3-5 では中和活性が顕著に低下していました(他のmAbに比べて、2.6- から 8.0-倍)。 B.1.351 は、9-105 や 10-121で中和されましたが、6-74、3-5、8-92では中和されません。9-105 と 10-121 は、B.1.351 に対しては中和活性が低下しました(それぞれ、6.0-倍 、19-倍)。

評価した変異株は、6-74に対しては抵抗性を示し、これは恐らく、NTDに発生している変異の影響だと思われます。RBDをターゲットとするmAbの中和活性は、P.1 と B.1.351に対して減少しており、K417N/T、E484K、N501Y 変異がクリティカルなのだと考えられます。個々の変異が及ぼす影響を解析すると、K417N と K417T は、3-5に対してはクリティカルであり、8-92に対して少し影響を与えています。E484K と N501Yは、RBDをターゲットとするmAbに対しては影響を与えていません。 しかしながら、K417N、E484K、N501Yのコンビネーションでは、3-5、8-92、10-121の中和活性が低下します。興味深いのは、9-105 は、K417N の影響を受けますが、これら3個の変異の組み合わせに対しては、効果的な中和活性をしましました。今後とも発生する変異に対する影響を調査していくことは非常に重要です。

膣内バクテリアが持つレクチン群の存在割合とそのフォールディング分子構造

University Grenoble Alpes, Franceらのグループがまとめ上げた膣内バクテリアが持つレクチン群の存在割合とそのフォールディング分子構造をご紹介します、面白い情報だと思います。
https://www.ncbi.nlm.nih.gov/pmc/articles/PMC8206207/

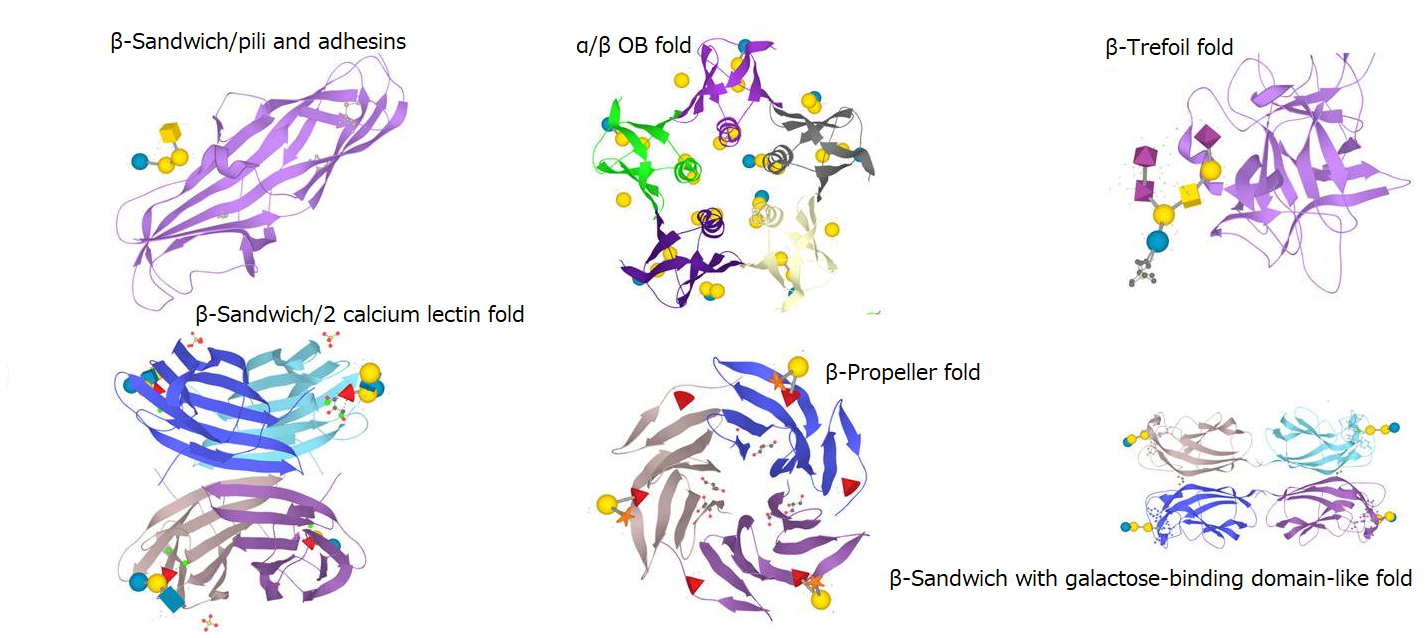
膣内バクテリアのレクチンフォールドの存在割合は、UniLectin3D databaseの情報が使われています。2278種がこのデータベースには登録されており、合計35種類のフォールドが同定されました。上位6種類の存在割合とそのフォールディング構造は下記と下図のようです。

β-Sandwich/pili and adhesins fold=22.4%,
α/β OB fold=16.9%,
β-Trefoil fold=14.5%,
β-Sandwich/2 calcium lectin fold=13.4%,
β-Propeller fold=6.6%,
β-Sandwich with galactose-binding domain-like fold=6.6%,
others=19.5%

SARS-CoV-2のFurin cleavage site(PRRAR)における変異の影響について:P681HとP681R

Cornell University, USAのグループは、SARS-CoV-2に存在するfurin cleavage siteのP681R変異の影響を議論しています。
https://www.ncbi.nlm.nih.gov/pmc/articles/PMC8259907/

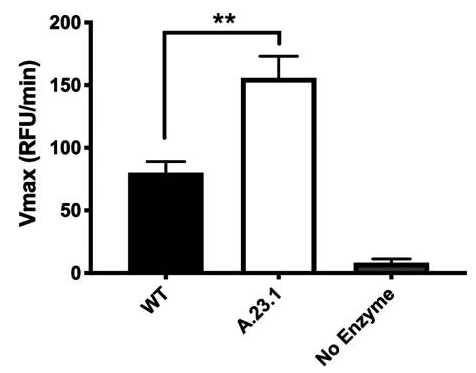
ウガンダで流行したA.23.1 変異株には、次のような変異がSARS-CoV-2 Spikeに存在します(F157L、V367F、Q613H、R102I、L141F、E484K、P681R)。著者らは、P681Rの変異に着目し、Wild type(P681)と比較したところ、下図に示すように、P618R 変異は、WTに比べて、furinによるS1/S2の切断効率を大幅に上昇させることが分かりました。

今日、最も流行しているSARS-CoV-2の変異株は、B.1.1.7であります。この変異株においては、spike S1/S2 “furin cleavage site” のP681H変異が特徴であり、感染率の上昇に関係していると考えられてきました。極最近では、B.1.617.2 という新しい変異株が B.1.1.7 に取って代わって来ていますが、この変異株もP681R 変異をもっており、同様にfurin cleavage siteの切断効率のアップが感染拡大に関係していると思われます。

B.1.617変異株以前に現れたA.23.1 変異株は、前記したようにP681R 変異を含んでおり、2020年の10月にウガンダで出現したのですが、2021年の5月には消滅し、他の変異株 B.1.351、B.1.525(P681Rを持たない)や、B.1.617.2(P681Rを持つ)が席巻しています。

大局的に見てみると、このことはP681R 変異というのは、furinを介したS1/S2切断には重要なのですが、必ずしもウイルス感染力アップの主要なドライバーにはなっていないことを示唆します。

Powered by WordPress |Copyright © 2020 Emukk. All rights reserved