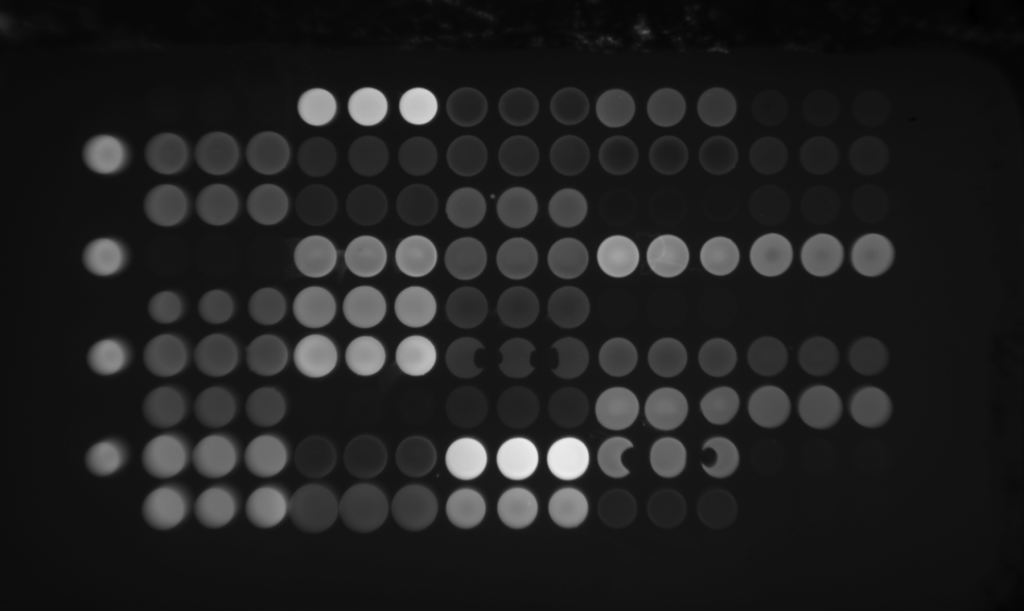
LecChip Ver1.0(レクチンマイクロアレイ)をGSRでスキャンした生画像に対して、ChatGPTにスポットの認識と数値化を行わせ、その結果をエクセルに出力するとともに糖鎖プロファイリングパターンも作製させ、サンプルに存在する糖鎖構造推定も行わせてみました。結構ちゃんとできます(驚き)。
ChatGPTへの指示内容
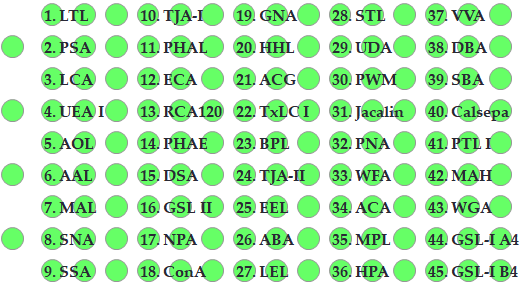
test-1.tifというイメージには、lecchip ver1.0.pngのフォーマットに従って、左端に縦に4個のマーカーが存在し、その右側には、横に15列、縦に9列のスポットが存在しています。これらスポットには、1番のLTLから始まり45番のGSL-I-B4に終わる45種類のレクチンが固定化されています。それぞれのレクチンは横方向に3回打たれていて、3個は同じレクチンです。tests-1.tifのイメージからこれらのスポットを認識し、その輝度を数値化したいと思います。
ChatGPTの回答
はい。test-1.tif の画像から、指定された 45種類 × 3スポット = 135スポットを認識して数値化しました。
今回の解析方法
- 左端の4個のマーカーは解析対象から除外
- 右側の 15列 × 9行をスポットとして認識
- 横方向3スポットを同一レクチンの3反復として対応付け
- 各スポットについて
- スポット内平均輝度
- スポット内標準偏差
- 局所背景輝度
- 背景補正後輝度
を算出
- 背景補正は、各スポットの外側に設定した局所リング領域の平均輝度を引いています
例えば、背景補正後の3反復平均は、
- LTL:1.37
- TJA-I:158.34
- LCA:39.19
- RCA120:75.52
- DSA:105.31
- ABA:167.88
- LEI:91.39
などとなっています。
Excelファイルを出力しました
test-1_lectin_intensity.xlsx
このExcelには、
- Spot data:135スポットそれぞれの測定値
- Lectin summary:45レクチンについて3反復の平均・標準偏差、背景補正値
- Analysis method:解析方法
を入れています。また、スポット認識位置を赤丸で表示した確認用画像も作成しました。
この状態から、次に **「横軸=45種類のレクチン、縦軸=背景補正後の信号強度、エラーバー=3反復の標準偏差」**というグラフを作成できます。
ChatGPTへの指示
エクセルの書式を変更してください。45種類のレクチン名と背景輝度を一列に書き、その横に、平均輝度、3個のスポットの標準偏差、背景補正値を書き出してください。
ChatGPTの回答
45種類のレクチンを1番から45番の順番に並べ、以下の5列にしています。
| レクチン名 | 背景輝度 | 平均輝度 | 3個のスポットの標準偏差 | 背景補正値 |
|---|
| LTL | … | … | … | … |
| PSA | … | … | … | … |
| LCA | … | … | … | … |
| … | … | … | … | … |
| GSL-I B4 | … | … | … | … |
変更後のExcelファイルをダウンロード
test-1_lectin_intensity_formatted.xlsx
元の「Spot data」と「Analysis method」も残しています。
ChatGPTへの指示
良くできました。レクチン名を横軸とし、縦軸を平均輝度として、棒グラフを作ってみてください。その棒グラフには、3個のスポットの標準偏差でエラーバーを加えてください。
ChatGPTの回答
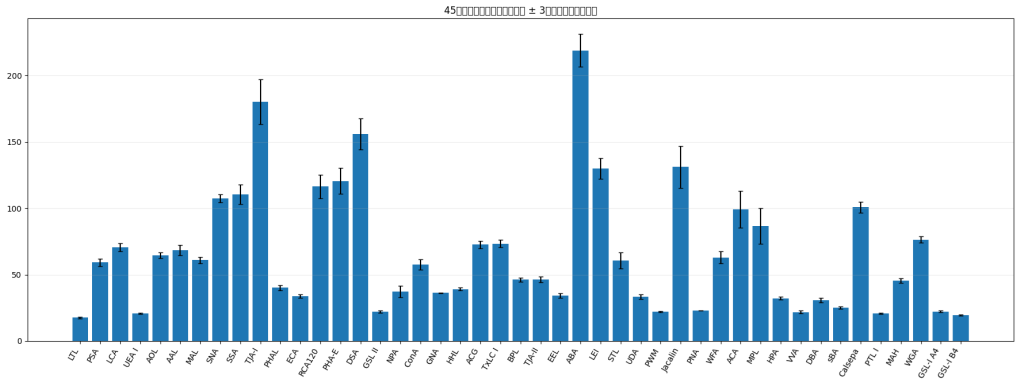
作成しました。
- 横軸:レクチン名
- 縦軸:平均輝度
- 棒:3個のスポットの平均輝度
- エラーバー:3個のスポットの標準偏差
45種類すべてを表示しています。
ChatGPTへの指示
Lectin Microarray Ver1.0 Specificity.pdf
このLectin Microarray Ver1.0 Specificity.pdfに書かれている各レクチンの糖鎖結合特異性も参考として、レクチンを用いて得られたプロファイル(棒グラフ)からサンプルに存在していると思う糖鎖構造について解析してください。
ChatGPTの回答
はい。今回の45種類のレクチンプロファイルと、添付いただいた Lectin Microarray Ver1.0 Specificity.pdf の各レクチンの糖鎖特異性を対応させると、かなり興味深い糖鎖プロファイルが見えてきます。
まず重要なのは、これは「特定の糖鎖構造を直接同定する」のではなく、複数のレクチンの反応パターンから、存在する可能性が高い糖鎖モチーフを推定する解析だという点です。同じレクチンでも複数の構造に結合するため、以下は「推定」です。
1. 今回のプロファイルで特に強いシグナル
背景補正後の平均値を見ると、特に目立つのは以下です。
| レクチン | 背景補正平均 | 主な糖鎖特異性 | 推定される構造 |
|---|
| ABA | 167.9 | Galβ1-3GalNAc、GlcNAc | T抗原など |
| TJA-I | 158.3 | Siaα2-6Gal/GalNAc | α2-6シアリル化 |
| DSA | 105.3 | (GlcNAcβ1-4)n、tri/tetra-antennary N-glycan | GlcNAc-rich/分岐N型 |
| Jacalin | 97.0 | T抗原、sialyl-T、Tn、Core3 | O型糖鎖 |
| LEL | 91.4 | GlcNAcβ1-4、polylactosamine | LacNAc/poly-LacNAc |
| RCA120 | 75.5 | Galβ1-4GlcNAc | terminal Gal |
| PHA-E | 74.9 | bi-antennary complex N-glycan、bisecting GlcNAc | 複合型N型 |
| SSA | 66.7 | Siaα2-6Gal/GalNAc | α2-6シアル酸 |
| ACA | 58.0 | T抗原、sialyl-T | O型糖鎖 |
| SNA | 55.6 | Siaα2-6Gal/GalNAc | α2-6シアル酸 |
| MPA | 55.0 | Tn、T抗原 | O型糖鎖 |
| Calsepa | 54.2 | galactosylated biantennary N型、High-Man | N型糖鎖 |
特異性については、PDFでは例えばABAがGalβ1-3GalNAc、JacalinがT抗原・sialyl-T・Tn、ACAがT抗原・sialyl-Tを認識するとされています。
2. 最も強く示唆されるのは「α2-6シアリル化」
今回かなり明瞭なのが、TJA-I 158.3 → SSA 66.7 → SNA 55.6、というパターンです。したがって、今回のサンプルにはSiaα2-6Gal、あるいはSiaα2-6GalNAcという末端構造を持つ糖鎖が存在する可能性が高いと考えられます。特にSNAとSSAがともに反応しているため、TJA-I単独の結果よりもα2-6シアル酸構造の存在を支持する組み合わせになっています。
3. O型糖鎖の「T抗原/sialyl-T」がかなり興味深い
もう一つ非常に特徴的なのが、ABA 167.9、Jacalin 97.0、ACA 58.0、MPA 55.0、という組み合わせです。このため、Galβ1-3GalNAc、すなわちT抗原(core 1型O-glycan)を持つ糖鎖が存在する可能性があります。さらに、Siaα2-3Galβ1-3GalNAc、すなわちsialyl-Tも考えられます。今回、T抗原系レクチンの反応が複数で認められていることから、O型糖鎖、とくにcore 1/T抗原系構造がサンプル中に存在する可能性はかなり注目すべきです。
4. 「sialyl-T」が特に重要かもしれません
ここは今回のプロファイルで面白いところです。一方では、SNA ↑、SSA ↑、TJA-I ↑なのでα2-6シアル酸が示唆されます。一方、Jacalin ↑、ACA ↑なのでsialyl-Tも候補になります。ただし、PDFに記載されたsialyl-Tは、Siaα2-3Galβ1-3GalNAc、です。したがって、今回の結果だけから、「α2-6シアル化されたT抗原」と「α2-3シアル化されたT抗原(sialyl-T)」を区別することはできません。むしろ現時点では、T抗原系O-glycanのシアリル化が存在し、その一部についてα2-3/α2-6シアル酸の両方が関与している可能性、として考えるのが妥当です。
5. GlcNAc-rich / poly-LacNAc構造もかなり示唆される
もう一つ非常に目立つのが、DSA 105.3、LEL 91.4、WGA 42.8、STL 35.4、です。したがって、GlcNAcβ1-4GlcNAc、やGalβ1-4GlcNAc(LacNAc)、が連続したpoly-LacNAc型構造、あるいはGlcNAcを多く含む分岐N-glycanが存在する可能性があります。特にLELとDSAがともに強いのは、この解釈を支持する重要な組み合わせです。
6. 複合型N-glycanも存在する可能性が高い
RCA120が75.5、PHA-Eが74.9、Calsepaが54.2と比較的高い値を示しています。したがって、galactosylated complex-type N-glycan、特にbi-antennary N-glycan、やbisecting GlcNAcを含むN-glycanが候補になります。
7. Core fucoseも候補になる
フコース系では、AOL 43.4、AAL 31.1、LCA 39.2、PSA 24.5、と反応しています。したがって、Fucα1-6GlcNAc、すなわちcore fucoseを持つ糖鎖が存在する可能性があります。
ただし、LTLとUEA-Iはかなり低いので、Lewis xやH-type 2などの特定の末端フコース構造が大量に存在するとまでは、このデータだけでは言えません。むしろ、末端フコースよりもcore fucoseの可能性に注目するのがよいと思います。
8. High-mannose型は「存在する可能性はあるが、主要成分とは言い切れない」
NPA、ConA、GNA、HHLは、NPA 8.0、ConA 15.4、GNA 16.4、HHL 17.9、でした。
PDFではこれらはいずれもHigh-Mannoseを認識します。したがって、High-mannose型N-glycanも存在する可能性はあります。ただし、今回のプロファイルでは、TJA-I、ABA、DSA、Jacalin、LEL、RCA120などに比べて反応が弱いので、High-mannose型がプロファイルの中心であるとは考えにくいです。
9. 今回の結果を一枚にまとめると
現時点での推定を模式的にすると、
                 N-glycan
                    │
          ┌─────────┴─────────┐
          │                   │
     Complex type          High mannose
          │
     bi/tri/tetra-antennary
          │
       GlcNAc/LacNAc
          │
      poly-LacNAc
          │
     ┌────┴────┐
     │         │
  Galβ1-4   α2-6 Sia
  GlcNAc
     │
   Core Fuc
   (一部?)

──────────────────────────────

                 O-glycan
                    │
             Galβ1-3GalNAc
                T-antigen
                    │
             ┌──────┴──────┐
             │             │
         sialylation    その他
             │
       sialyl-T候補
特に注目すべき4つ
① α2-6シアル酸構造
TJA-I、SNA、SSAが支持。
② T抗原/sialyl-T系O-glycan
ABA、Jacalin、ACA、MPAが支持。
③ GlcNAc/poly-LacNAcを含む構造
DSA、LEL、STL、WGAが支持。
④ Galβ1-4GlcNAcを持つcomplex-type N-glycan
RCA120、PHA-E、Calsepaが支持。
重要な注意点
今回の結果から**「この構造が確実に存在する」と断定することはできません**。例えばABAはGalβ1-3GalNAcだけでなくGlcNAcにも反応し、Jacalinも複数のO-glycan構造を認識します。PDF自体も各レクチンについて複数の認識構造を記載しています。そのため、今回のデータでは1つのレクチンの強度ではなく、複数レクチンが同じ糖鎖モチーフを支持しているかを見るのが重要です。今回のプロファイルでは、特に 「α2-6シアリル化」「T抗原/sialyl-T系O-glycan」「GlcNAc/poly-LacNAc」「galactosylated complex-type N-glycan」 の4群が目立ちます。
ChatGPTへの指示
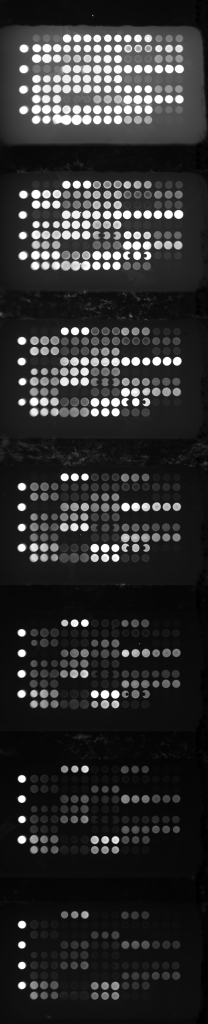
このイメージには、レクチンが45個スポットされたウエルが7個存在します。この7個のウエルを認識し、同じようにすべてのウエルのスポットを認識して、同じように数値化してください。
ChatGPTの回答
はい。画像内の7ウェルを認識し、各ウェルについて45レクチン×3スポット=135スポット、合計945スポットを同じ方法で数値化しました。
解析方法
- 各ウェル:9行 × 15列 = 135スポット
- 各行:5種類のレクチン × 3反復
- スポットROI:中心から半径30 pixel
- 背景ROI:半径38~43 pixelの環状領域
- 各レクチンについて
- 3スポットの平均輝度
- 3スポットの標準偏差
- 平均背景輝度
- 背景補正値 = 平均輝度 − 背景輝度
- 7ウェルすべてについて同じ処理を実施しました。
出力ファイル
7ウェル・全レクチンの数値化Excel
このExcelには、上記解析で希望されたフォーマットに合わせています。Well1~Well7まで945スポットの解析結果です。
重要な注意点
今回のCy3画像は16-bit画像で、一部の強いスポットが65535に達して飽和しています。そのため、飽和したスポットについては実際の信号強度が測定値よりさらに高い可能性があります。特にウェルによって飽和の程度が違うため、ウェル間比較では背景補正値だけでなく、飽和の有無も考慮する必要があります。